


Iterazione Xn Yn
Iterazione Xn Yn
0 0 0
1 1 0
2 -0,4 0,3
3 1,076 -0,12
Modello di sistema dinamico a tempi discreti
-0,7408864 0,3228
4
5 0,5543222792
-0,22226592
Xn + 1 = Yn + 1 - a*Xn^2 a= 1,4
6 0,3475516151
0,1662966838
Yn + 1 = b*Xn b= 0,3
7 0,9971877086
0,1042654845
8 -0,287871172
0,2991563126
Condizioni iniziali
Condizioni iniziali: Xo= 0
9 1,183138576
-0,08636135161
10 -1,046104998
0,3549415729
11 -0,1771283616
-0,3138314995
12 0,6422442614
-0,05313850849
13 0,3693927237
0,1926732784
14 1,0016419 0,1108178171
15 -0,2937832782
0,3004925701
16 1,17966051-0,08813498347
17 -1,036373469
0,3538981529
18 -0,1497998011
-0,3109120407
19 0,6576719868
-0,04493994032
20 0,3495146406
0,197301596
21 1,026276918
0,1048543922
22 -0,3696876463
0,3078830755
23 1,116546537
-0,1109062939
24 -0,8562529319
0,3349639612
25 0,3085272444
-0,2568758796
26 0,6098594357
0,09255817332
27 0,5718582296
0,1829578307
28 0,7251272621
0,1715574689
29 0,4354241041
0,2175381786
30 0,952106368
0,1306272312
31 -0,1384819192
0,2856319104
32 1,258783772
-0,04154457575
33 -1,259895793
0,3776351315
34 -0,844637242
-0,377968738
35 -0,3767456368
-0,2533911726
36 0,5478966427
-0,113023691
37 0,4667092855
0,1643689928
38 0,8594244127
0,1400127857
39 0,105958336
0,2578273238
40 1,242109287
0,03178750079
41 -1,128182173
0,3726327862
42 -0,4092802366
-0,338454652
43 0,4270309111
-0,122784071
44 0,6219183704
0,1281092733
45 0,5866138301
0,1865755111
46 0,7048134112
0,175984149
47 0,4805174266
0,2114440234
48 0,8881882271
0,144155228
49 0,03972557048
0,2664564681
50 1,264247099
0,01191767115
51 -1,225731346
0,3792741296
52 -0,7241101374
-0,3677194039
53 -0,1017890915
-0,2172330412
54 0,768261532
-0,03053672744
55 0,1431471784
0,2304784596
1,201790899
0,04294415353
56
57 -0,9790777574
0,3605372697
58 0,01850671262
-0,2937233272
59 0,705797175
0,005552013787
60 0,3081425007
0,2117391525
61 1,078806632
0,0924427502
62 -0,5369104973
0,3236419895
63 0,9200599546
-0,1610731492
64 -0,3461875972
0,2760179864
65 1,108233793
-0,1038562791
66 -0,823311275
0,3324701379
67 0,3834921001
-0,2469933825
68 0,5471139503
0,11504763
69 0,6959804856
0,1641341851
70 0,4859898142
0,2087941457
71 0,8781336064
0,1457969442
72 0,06623086123
0,2634400819
73 1,257298944
0,01986925837
74 -1,193251631
0,3771896832
75 -0,6161995523
-0,3579754892
76 0,1104418673
-0,1848598657
77 0,7980637658
0,0331325602
78 0,1414644761
0,2394191298
79 1,211402053
0,04243934284
80 -1,012053563
0,3634206158
81 -0,07053276506
-0,303616069
82 0,6894191117
-0,02115982952
83 0,3134219743
0,2068257335
84 1,069299066
0,09402659228
85 -0,5067340972
0,3207897198
86 0,9612984964
-0,1520202292
87 -0,445752948
0,2883895489
88 1,010215582
-0,1337258844
89 -0,5624756152
0,3030646746
90 0,8601343298
-0,1687426846
- il modello di Lorenz per le previsioni meteorologiche;
- il modello Preda - Predatore di Volterra;
- il modello di competizione per il cibo di Volterra;
- il modello di May e una sua estensione bi-dimensionale;
- il dilemma del prigioniero e l'equilibrio di Nash;
- l'alternativa cooperazione/competizione nelle organizzazioni.
Abstract
Discrete Dynamic Systems (DDS) : Recurrence Maps (Roberto Chiappi) This article, written in plain style and addressed to non specialist readers, has broadly educational purposes. The issues which are brought up belong to the field of applied mathematics and include:- mathematic biology;
- dynamic systems;
- management and team work.
- the Lorenz weather forecast model;
- the Volterra predator / prey model;
- the Volterra competition for food model;
- the May Logistic model and two-dimensional extension;
- the Prisoner's Dilemma and Nash equilibrium;
- the cooperation vs competition alternative in organizations.
Introduzione: Mappe ed Equazioni differenziali
Una mappa di ricorrenza è sostanzialmente una regola che determina lo stato del sistema al tempoLa mappa di Henon
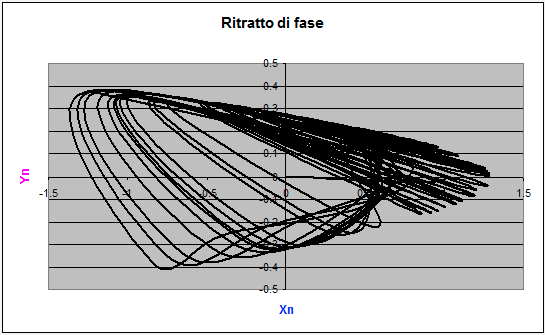
Si tratta di una mappa bidimensionale, proposta nel 1976 dall'\astronomo Henon, con lo scopo di fornire un modello, il più semplice possibile, capace di mostrare le proprietà essenziali dell'attrattore strano presente nel modello di Lorenz. In particolare, la mappa giocò un ruolo fondamentale per capire la struttura geometrica del modello di Lorenz. Henon Assistendo ad una conferenza di Lorenz sugli "attrattori strani", pensò che queste nuove teorie matematiche, potessero spiegare i risultati da lui ottenuti nel 1962 osservando il movimento delle stelle all'interno di una galassia. Studiando il ritratto di fase della sua mappa (ottenuta con 10.000 iterazioni; noi ci fermeremo a 100, ma chi lo desidera può estenderle utilizzando lo stesso foglio Excel) Henon osservò che essa presentava caratteristiche di auto somiglianza (il dettaglio riproduce l'intero insieme) e che pertanto aveva una tipica struttura frattale. Tale figura era un attrattore caotico che venne chiamato "attrattore strano di Henon". Mappa di Henon| Iteraz [math]n[/math] |
[math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 0 | 0 |
| 1 | 1 | 0 |
| 2 | -0.4 | 0.3 |
| 3 | 1.076 | -0.12 |
| 4 | -0.74089 | 0.3228 |
| 5 | 0.554322 | -0.22227 |
| 6 | 0.347552 | 0.166297 |
| 7 | 0.997188 | 0.104265 |
| 8 | -0.28787 | 0.299156 |
| 9 | 1.183139 | -0.08636 |
| 10 | -1.0461 | 0.354942 |
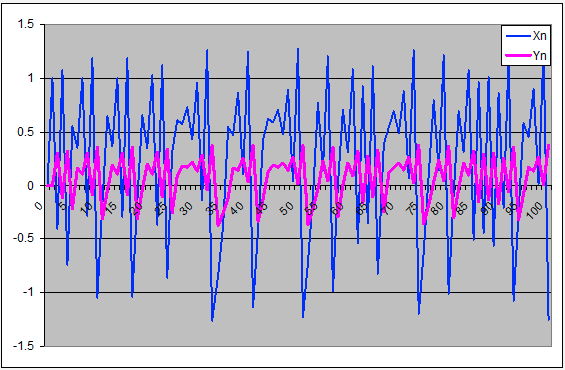 Ritratto di fase delle prime 100 iterazioni:
Il Modello Preda-Predatore
La nascita della ecologia matematica si fa usualmente coincidere con gli anni 30 dello scorso secolo quando il biologo Umberto D'Ancona, coinvolse il suocero e matematico Vito Volterra, nello studio di alcune fluttuazioni osservate nella popolazione dei pesci in Adriatico. I biologi del tempo cercavano di mettere in relazione tali fluttuazioni con i vari fattori esogeni come il clima, la pesca o la quantità di nutrienti presenti in mare. L'approccio di Volterra fu completamente diverso. Ipotizzò infatti un sistema di prede e predatori viventi nella stessa nicchia ecologica. L'approccio dunque da esogeno divenne endogeno (interno al sistema), ma il successo fu decretato, oltre che dalla semplicità, dalla capacità del modello matematico di descrivere molto bene le fluttuazioni periodiche delle popolazioni di prede e predatori. Il modello ha avuto poi numerose conferme sia in laboratorio (culture batteriche), sia in natura nel rapporto tra Erbivori e Carnivori che condividevano lo stesso territorio. In particolare esso è stato applicato con successo alla analisi dell'andamento delle popolazioni di Lepri e Linci in alcune regioni del Canada. Volterra (e Lotka che era poco prima arrivato alle sue stesse conclusioni) descrisse il modello in termini di equazioni differenziali. La trattazione originale è ben riassunta nell'articolo di Hume, pubblicato su www.skuola.net di cui si riferisce in bibliografia. Nel seguito invece il modello di Volterra è rappresentato in termini discreti (ore, giorni, settimane, mesi, anni…) mediante mappe. Modello di Volterra[math]X_{n + 1} = X_n\cdot (1 + r) - s\cdot X_n^2 - b\cdot X_n \cdot Y_n[/math] |
[math]Y_{n + 1} = Y_n\cdot (-e + c \cdot X_n)[/math] |
[math]X_{n + 1} = X_n[/math] |
[math]Y_{n + 1} = Y_n[/math] |
[math] \displaystyle X_n\cdot (1 + r) - s\cdot X_n^2 - b\cdot X_n\cdot Y_n = X_n [/math] |
[math] \displaystyle Y_n\cdot (-e + c\cdot X_n) = Y_n) [/math] |
[math] \displaystyle X_n\cdot (r - s\cdot X_n - b\cdot Y_n) = 0 [/math] |
[math]\displaystyle Y_n\cdot (-e -1 + c\cdot X_n) = 0 [/math] |
| r = | 0.5 |
| s = | 0.21 |
| b = | 1 |
| e = | 0.6 |
| c = | 1 |
| Iteraz. n | [math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 1 | 0.5 |
| 1 | 0.79 | 0.2 |
| 2 | 0.895939 | 0.038 |
| 3 | 1.141294 | 0.011246 |
| 4 | 1.425571 | 0.006087 |
| 5 | 1.702906 | 0.005025 |
| 6 | 1.936824 | 0.005543 |
| 7 | 2.106731 | 0.007409 |
| 8 | 2.21244 | 0.011164 |
| 9 | 2.266033 | 0.018001 |
| 10 | 2.279928 | 0.029991 |
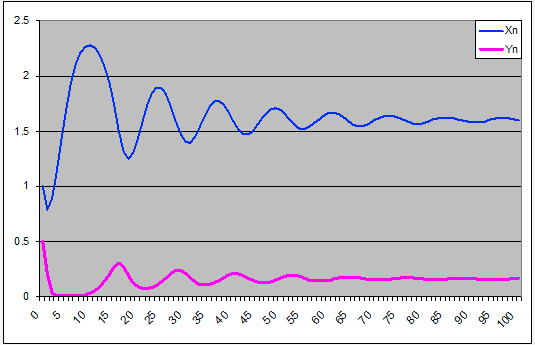 All'inizio, si osservi, i predatori (
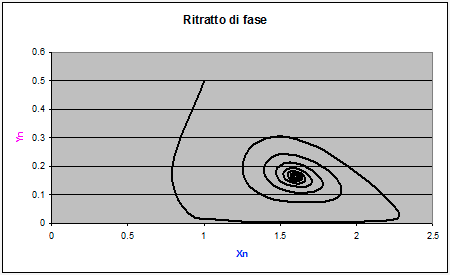 Il grafico mostra chiaramente come, partendo dalla condizione iniziale
| r = | 0.5 |
| s = | 0.18 |
| b = | 1 |
| e = | 0.6 |
| c = | 1 |
| Iteraz. n | [math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 1 | 0.5 |
| 1 | 0.82 | 0.2 |
| 2 | 0.944968 | 0.044 |
| 3 | 1.21514 | 0.015179 |
| 4 | 1.538484 | 0.009337 |
| 5 | 1.867313 | 0.008763 |
| 6 | 2.156973 | 0.011105 |
| 7 | 2.37405 | 0.01729 |
| 8 | 2.505527 | 0.030673 |
| 9 | 2.551458 | 0.058449 |
| 10 | 2.506267 | 0.114061 |
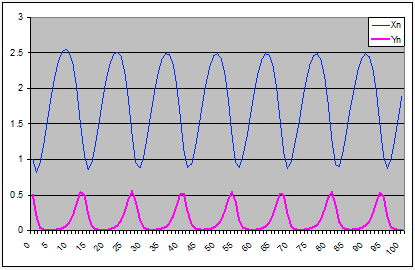 Ritratto di fase delle prime 100 iterazioni:
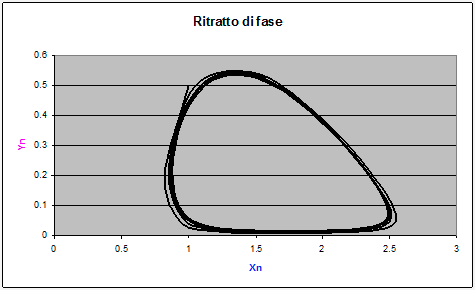 3° Simulazione
Effettuiamo un terza simulazione per comprendere meglio il significato della scomparsa dell'attrattore punto fisso e del nuovo attrattore periodico. I parametri sono ovviamente identici a quelli della seconda simulazione.
| r = | 0.5 |
| s = | 0.18 |
| b = | 1 |
| e = | 0.6 |
| c = | 1 |
| Iteraz. n | (X_n) | (Y_n) |
| 0 | 1.5 | 0.3 |
| 1 | 1.395 | 0.27 |
| 2 | 1.365566 | 0.21465 |
| 3 | 1.419571 | 0.164329 |
| 4 | 1.533348 | 0.134679 |
| 5 | 1.670304 | 0.125702 |
| 6 | 1.79331 | 0.13454 |
| 7 | 1.869821 | 0.160548 |
| 8 | 1.875215 | 0.203867 |
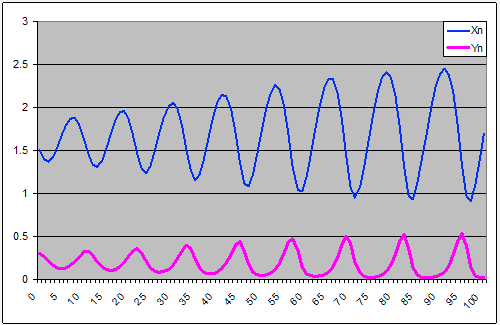 Ritratto di fase delle prime 100 iterazioni:
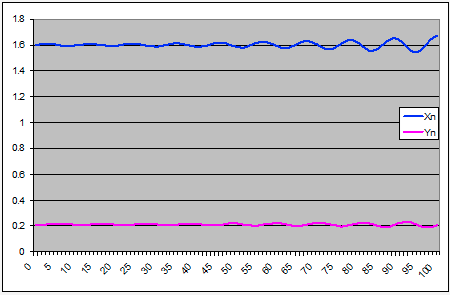
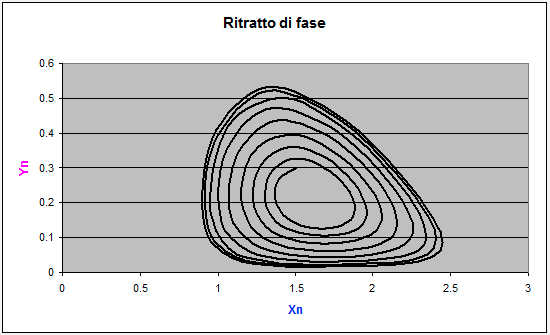 Le oscillazioni si ampliano progressivamente sino a raggiungere l'ampiezza di quelle della simulazione precedente (la 2°) per poi restare stazionarie. Il ritratto di fase mostra una spirale crescente che dal punto iniziale
 Una storiella dello scorso secolo:
Nel 1985 sull'Economist comparve questa breve storia diretta al mondo del business e poi diffusasi anche in Italia all'interno di alcune grandi aziende:
"Ogni mattina, in Africa, si svegliano un leone ed una gazzella. Il leone sa che deve correre più veloce della gazzella, altrimenti morirà di fame. La gazzella sa che deve correre più veloce del leone, altrimenti sarà mangiata. Che tu sia leone o gazzella, impara comunque a correre!".
Il sociologo Domenico De Masi, nel suo libro "Il futuro del lavoro" (Rizzoli, Milano 1999) si divertì, con una provocazione diretta al mondo del business, a rovesciare la storia:
"Appena sorgerà il sole, il leone e la gazzella diventeranno amici e non fu più necessario che, ai primi raggi, l'uno e l'altra comincino a correre. Perché, nella società postindustriale, se la gazzella non correrà più del leone, non verrà sbranata. Né il leone, se non correrà più della gazzella, morirà di fame".
Raccontando al contrario la storiella, che alcuni manager avevano incorniciato dietro la loro scrivania, De Masi criticava taluni eccessi della competizione che trascurano i benefici della cooperazione all'interno delle organizzazioni: "nella società postindustriale noi dobbiamo sostituire la competitività distruttiva che si fa in nome del mercato e della carriera con l'emulazione solidale, che è cosa completamente diversa".
Competizione per il cibo tra due Specie
Nel 1927 Volterra, aveva proposto, sempre usando le equazioni differenziali, un altro fondamentale modello della ecologia matematica, che descrive la dinamica di due popolazioni appartenenti alla stessa nicchia ecologica che competono anche per lo stesso cibo. Per intendersi non esiste, in questo caso, alcun rapporto preda-predatore, semplicemente le due specie si nutrono dello stesso cibo. Possono essere due erbivori, due carnivori, ecc. L'interazione tra le due popolazioni prevede un termine negativo delle due densità| X | Densita Popolazione 1 |
| Y | Densità Popolazione 2 |
[math]X_{n + 1} = X_n \cdot (a - s \cdot X_n - b \cdot Y_n)[/math]
|
[math]Y_{n + 1} = Y_n \cdot (e - d \cdot Y_n - c \cdot X_n)[/math] |
| a = | 2 |
| s = | 2 |
| b = | 3 |
| e = | 2 |
| d = | 2 |
| c = | 3 |
| Iteraz. n | (X_n) | (Y_n) |
| 0 | 0.2 | 0.2 |
| 1 | 0.2 | 0.2 |
| 2 | 0.2 | 0.2 |
| 3 | 0.2 | 0.2 |
| 4 | 0.2 | 0.2 |
| 5 | 0.2 | 0.2 |
| 6 | 0.2 | 0.2 |
| 7 | 0.2 | 0.2 |
| 8 | 0.2 | 0.2 |
| 9 | 0.2 | 0.2 |
| 10 | 0.2 | 0.2 |
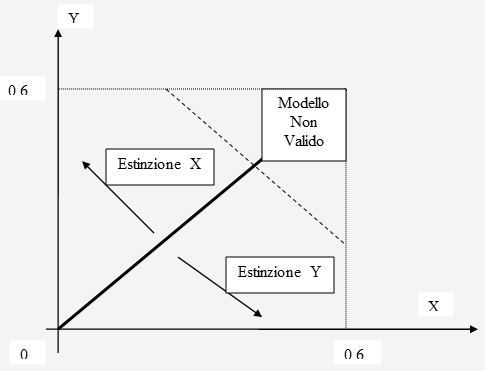 Il grafico vuole però anche indicare che, se ci scostiamo anche di poco dalla situazione di equilibrio, la specie che parte svantaggiata è destinata, più o meno rapidamente, ad estinguersi. Dunque l'equilibrio è da intendersi come instabile e la bisettrice va pensata come uno stretto crinale scostandosi dal quale si finisce nel burrone. Si parla, più propriamente, del luogo dei punti di biforcazione nel comportamento del sistema: da un lato estinzione della specie X, dall'altro estinzione della specie Y.
2° Simulazione
Per mostrare questa tendenza all'estinzione della popolazione minoritaria assumiamo che, a parità di tutti gli altri parametri, sia
| Iteraz. n | [math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 0.19 | 0.2 |
| 1 | 0.1938 | 0.206 |
| 2 | 0.192715 | 0.20736 |
| 3 | 0.191268 | 0.208839 |
| 4 | 0.189536 | 0.210618 |
| 5 | 0.187465 | 0.212757 |
| 6 | 0.18499 | 0.21533 |
| 7 | 0.182036 | 0.218424 |
| 8 | 0.178515 | 0.222147 |
| 9 | 0.174325 | 0.226626 |
| 10 | 0.169352 | 0.232013 |
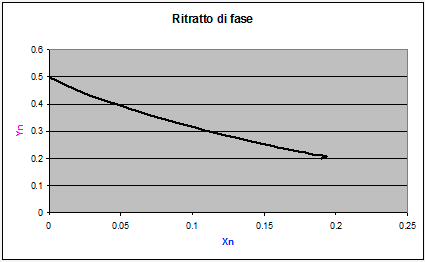
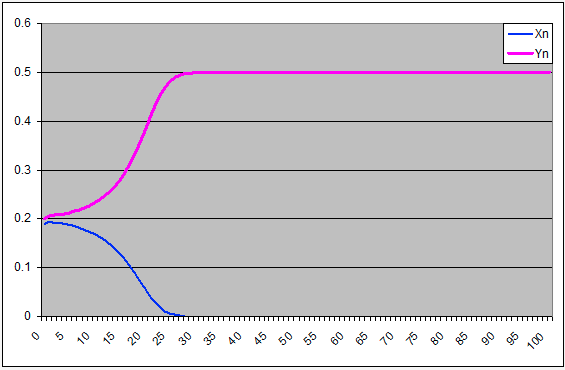 Il ritratto di fase mostra sostanzialmente la stessa cosa: partendo dal punto
 3° Simulazione
Vogliamo ora mostrare che, cambiando i valori dei parametri, si possono ottenere situazioni in cui una specie vince la competizione pur partendo da condizioni iniziali svantaggiate (nell'esempio
| a = | 2 |
| s = | 2 |
| b = | 4.5 |
| e = | 2 |
| d = | 2 |
| c = | 3 |
| Iteraz. n | [math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 0.4 | 0.2 |
| 1 | 0.12 | 0.08 |
| 2 | 0.168 | 0.1184 |
| 3 | 0.190042 | 0.149089 |
| 4 | 0.180352 | 0.168724 |
| 5 | 0.158717 | 0.189223 |
| 6 | 0.131904 | 0.216737 |
| 7 | 0.100363 | 0.253759 |
| 8 | 0.065974 | 0.302327 |
| 9 | 0.033487 | 0.362013 |
| 10 | 0.010179 | 0.425551 |
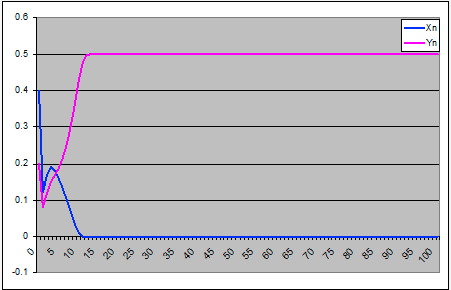 Ritratto di fase delle prime 100 iterazioni:
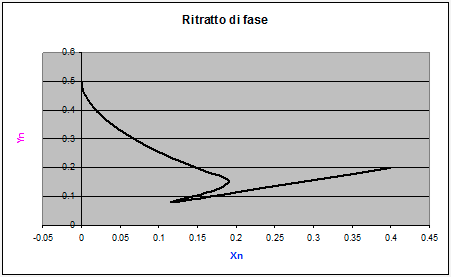 Il risultato ottenuto è riferito ad un ecosistema, assunto implicitamente come dato e costante, nel quale vivono le due specie. Tuttavia una cambiamento dell'ecosistema può cambiare la posizione relativa delle due specie nella competizione per la sopravvivenza. Quella che prima era più adatta può divenire ora meno adatta e quindi essere destinata all'estinzione.
La mappa logistica
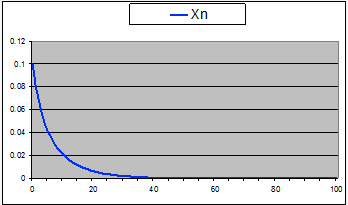
La biologia evoluzionistica aveva, nel secondo dopoguerra, bisogno di nuovi paradigmi e modelli, e le equazioni differenziali, continue per natura, erano spesso troppo complicate, quindi irrisolvibili. Mediante l'uso di metodi numerici a queste si sostituirono equazioni discrete, chiamate anche equazioni alle differenze finite, risolubili spesso in maniera ricorsiva. Esse possono essere usate per modellare sistemi che evolvono in maniera discreta. Un esempio semplice può essere quello di voler calcolare il numero di individui presenti negli anni, partendo da un dato anno, dove la dipendenza dell'anno corrente deriva solamente dal numero di individui dell'anno precedente (mappe del primo ordine). Se…- Se: [math] K \lt 1 [/math]la popolazione, partendo da[math]X_o[/math]tende ad estinguersi.
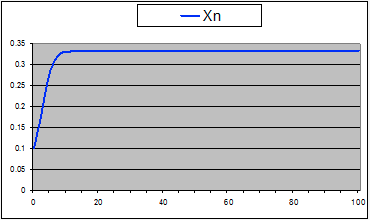
- Se: [math] 1 \lt K \lt 2 [/math]si tende al punto fisso attrattore[math](K - 1)/K[/math], indipendentemente da[math]X_o[/math]
- Se: [math] 2 \lt K \lt 3 [/math]si hanno oscillazioni smorzate tra valori inferiori e superiori a[math](K -1)/K[/math]
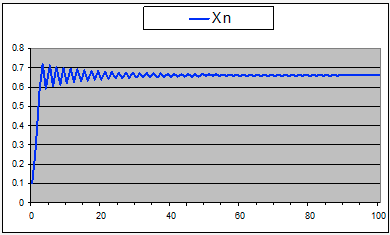
- Se: [math] 3 \lt K \lt 3.45 [/math]la popolazione continua ad oscillare permanentemente tra un massimo ed un minimo. E' come se il punto fisso si fosse sdoppiato.
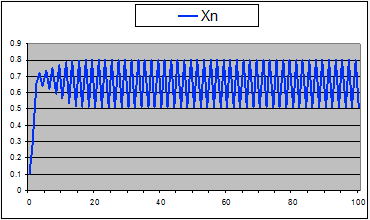
- Se: [math] 3.45 \lt K \lt 3.57 [/math]si hanno dei continui sdoppiamenti di periodo.
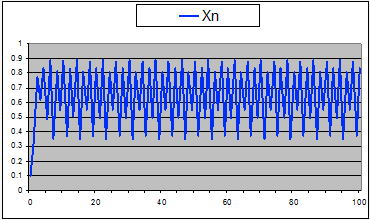
- Se: [math] 3.57 \lt K \lt 4 [/math]il sistema diventa caotico ed imprevedibile. Il punto fisso non esiste più.
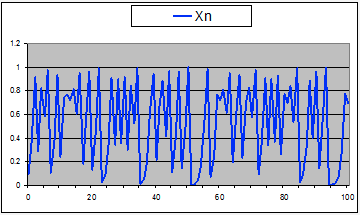
- Se: K > 4 il sistema diverge, si distrugge o quantomeno perde significato fisico, biologico od economico.1
Coesistenza tra due Specie
Pensate alle tigri e agli elefanti. Non competono per il cibo, le tigri sono carnivore e gli elefanti no, ne sono uno preda dell'altro. Difficilmente una tigre osa aggredire un elefante, a meno che non si tratti di un cucciolo o di un individuo malato isolato dal branco. L'elefante è molto più lento della tigre nei movimenti, ma è dotato di una spessa corazza a prova degli artigli e dei denti della tigre; inoltre se la tigre arriva alla portata della sua proboscide può facilmente avere spezzata la sua colonna vertebrale. Insomma se una tigre assetata vede in riva ad un fiume un branco di elefanti, che si fanno la doccia, preferisce spostarsi in un'altra ansa dello stesso fiume dove, magari può incontrare un branco di zebre. Da ragazzino avevo in casa un gatto e una tartaruga. Il gatto aveva la sua ciotola con carne o pesce e la tartaruga gli avanzi di vari tipi di insalate. Mangiavano insieme senza problemi. Ogni tanto, soprattutto quando era stata messa la cera sul pavimento, il gatto si divertiva con le zampate a far scivolare, e poi con un balzo dall'altro lato, a intercettare la tartaruga. La tartaruga ritirava zampe e testa nella sua casa e aspettava pazientemente che il gioco finisse. Molti altri esempi si potrebbero fare: mosche e api che, soprattutto in campagna, condividono lo stesso habitat, ma non sono né nel rapporto preda-predatore né in competizione per il cibo. Nel seguito si è provato a modellare, con una mappa logistica bi-dimensionale, la coesistenza di due specie che sono in interazione per l'habitat.| 0 < X < 1 | % di Numerosità della popolazione X rispetto al Max | |||
| 0 < Y < 1 | % di Numerosità della popolazione Y rispetto al Max | |||
| 1 - X | % di espansione rimanente per la popolazione X | |||
| 1 - Y | % di espansione rimanente per la popolazione Y | |||
| Modello di sistema dinamico a tempi discreti (Mappa): | ||||
[math]X_{n + 1} = X_n \cdot (1 - X_n) \cdot (C_1 - Y_n)[/math] |
[math]K_1 = C_1 - Y_n[/math]
|
|||
[math]Y_{n + 1} = Y_n \cdot (1 - Y_n) \cdot (C_2 - X_n)[/math] |
[math]K_2 = C_2 - X_n[/math]
|
| Iteraz. n | [math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 0.98 | 0.01 |
| 1 | 0.072324 | 0.026928 |
| 2 | 0.246438 | 0.095056 |
| 3 | 0.669461 | 0.297075 |
| 4 | 0.753009 | 0.632842 |
| 5 | 0.57045 | 0.684742 |
| 6 | 0.738849 | 0.675577 |
| 7 | 0.583566 | 0.649004 |
| 8 | 0.741443 | 0.709917 |
| 9 | 0.573215 | 0.60927 |
| 10 | 0.756115 | 0.744363 |
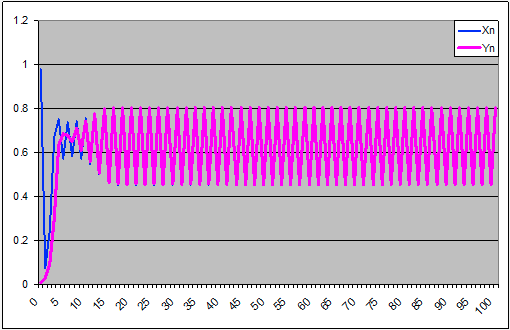 Ritaratto di fase delle prime 100 iterazioni:
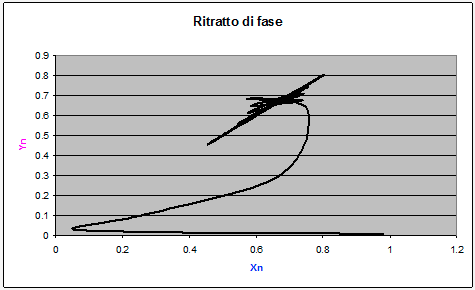 Si vede quindi che dopo qualche decina di iterazioni i valori di
| Iteraz. n | [math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 0.6 | 0.4 |
| 1 | 0.624 | 0.336 |
| 2 | 0.625038 | 0.306991 |
| 3 | 0.631148 | 0.29252 |
| 4 | 0.630302 | 0.283287 |
| 5 | 0.633052 | 0.278097 |
| 6 | 0.63229 | 0.274427 |
| 7 | 0.633694 | 0.272334 |
| 8 | 0.633162 | 0.270758 |
| 9 | 0.633915 | 0.26988 |
| 10 | 0.63357 | 0.26918 |
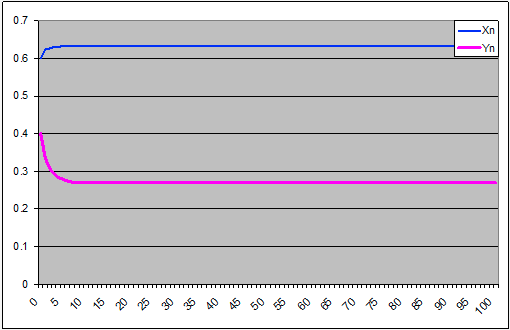 Ritratto di fase delle prime 100 iterazioni:
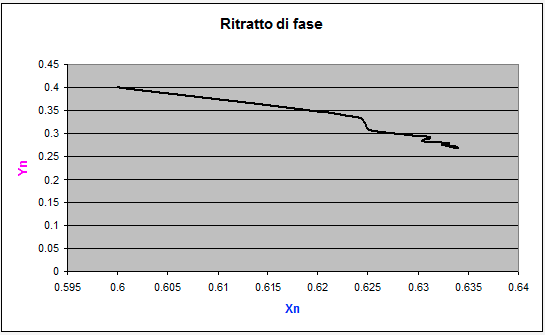 3° Simulazione:
Rispetto alla seconda simulazione abbiamo lasciato invariate le condizioni iniziali (
| Iteraz. n | [math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 0.6 | 0.4 |
| 1 | 0.72 | 0.336 |
| 2 | 0.617702 | 0.285573 |
| 3 | 0.73546 | 0.282018 |
| 4 | 0.60663 | 0.256049 |
| 5 | 0.750241 | 0.26542 |
| 6 | 0.587356 | 0.243668 |
| 7 | 0.764997 | 0.260342 |
| 8 | 0.564437 | 0.237817 |
| 9 | 0.777416 | 0.26021 |
| 10 | 0.543311 | 0.235349 |
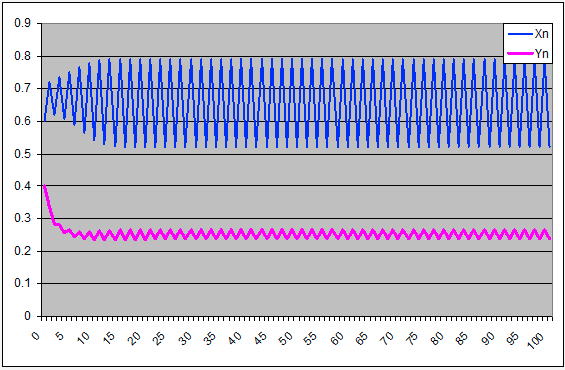 L'aumento del parametro
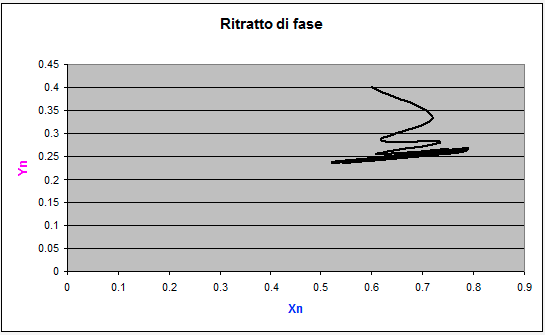 4° Simulazione:
In questa simulazione più che confrontare l'evoluzione di due specie vogliamo toccare con mano quanto intuito da Poincaré: "…può accadere che piccole differenze nelle condizioni iniziali ne producano di grandissime nei fenomeni finali…" ed osservato da Lorenz, sul suo primitivo computer, che lo ha portato a titolare la sua conferenza: "Può, il batter d'ali di una farfalla in Brasile, provocare un tornado in Texas?".
Abbiamo visto che normalmente, nel modello riportato sopra (1° Simulazione), gli andamenti a regime, a parte un breve transitorio iniziale, sono indipendenti dalle condizioni iniziali.
Assumiamo eguali i parametri delle equazioni che descrivono l'andamento di
| Iteraz. N | [math]X_n[/math] |
[math]Y_n[/math] |
| 0 | 0.6 | 0.6 |
| 1 | 0.816 | 0.816 |
| 2 | 0.478058 | 0.478058 |
| 3 | 0.87879 | 0.87879 |
| 4 | 0.332466 | 0.332466 |
| 5 | 0.813944 | 0.813944 |
| 6 | 0.482493 | 0.482493 |
| 7 | 0.878299 | 0.878299 |
| 8 | 0.333679 | 0.333679 |
| 9 | 0.81516 | 0.81516 |
| 10 | 0.479873 | 0.479873 |
| … | … | … |
| 90 | 0.522222 | 0.426411 |
| 91 | 0.891633 | 0.850611 |
| 92 | 0.304306 | 0.394986 |
| 93 | 0.763196 | 0.883167 |
| 94 | 0.563299 | 0.333983 |
| 95 | 0.901816 | 0.764454 |
| 96 | 0.286489 | 0.557872 |
| 97 | 0.703615 | 0.915941 |
| 98 | 0.643152 | 0.2538 |
| 99 | 0.859781 | 0.635738 |
| 100 | 0.405587 | 0.727197 |
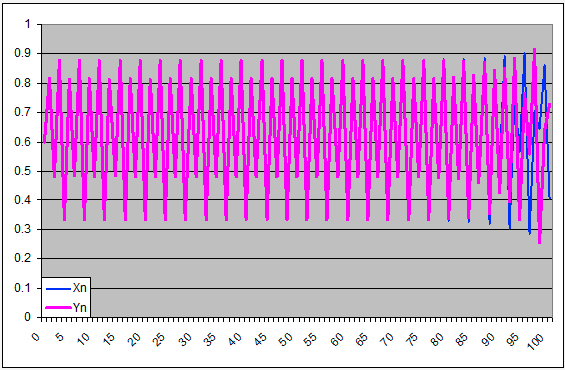 I valori numerici ed il grafico delle prime 100 iterazioni ci mostrano che all'inizio gli andamenti di
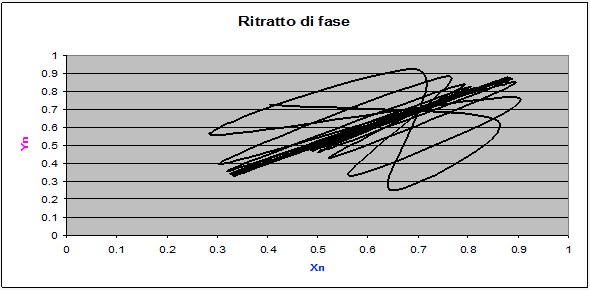
Conclusioni
Tutti avranno osservato le fotografie di uccelli, neanche troppo piccoli, tranquillamente posati a becchettare sulla schiena di un ippopotamo o di un rinoceronte, oppure quelle, ancor più stupefacenti, di uccelli posati nella bocca aperta di un coccodrillo, che si guarda bene dal divorare l'uccello come facilmente potrebbe fare. Si tratta di esempi di cooperazione tra specie. Nel primo caso il volatile si nutre dei parassiti presenti sulla schiena dei pachidermi. La cooperazione consiste nel fatto che l'uccello si nutre ed il pachiderma si libera dei parassiti. Nel caso del coccodrillo il volatile, nutrendosi, svolge il ruolo benefico di igienista dentale per l'alligatore. Un altro esempio di cooperazione tra specie è quello tra gli umani e i cani o i gatti. Gli animali ricevono cibo, cure e un ricovero sicuro; gli umani compagnia, affetto e fedeltà; per non parlare della pet-therapy , oggi assai diffusa, in alcune cure psicologiche. Un altro esempio clamoroso di cooperazione tra specie molto lontane è quello tra gli umani e la propria flora batterica intestinale senza la quale il nostro metabolismo non potrebbe funzionare. Pare che circa 2 Kg del nostro peso corporeo sia dovuto ai batteri, indispensabili e residenti del nostro intestino. Dunque tra specie diverse, oltre ad avere diversi livelli di competizione, come visto nei paragrafi precedenti, possiamo avere anche diversi livelli di cooperazione. Non possiamo qui entrare nei dettagli di quello che accade invece all'interno della stessa specie, salvo effettuare la generica osservazione che molto spesso, negli animali le competizioni per il cibo, gli accoppiamenti, il territorio si risolvono in combattimenti rituali in cui il perdente riconosce la superiorità del vincente e si allontana dal territorio o dal branco. Infine, per concludere, vogliamo fare cenno a come si è tentato di modellare l'alternativa cooperazione/competizione all'interno delle organizzazioni umane.Il Dilemma del Prigioniero
Questo celebre gioco a due persone e a somma non nulla, è stato proposto per la prima volta da Merrill Flood e Melvin Dresher della RAND Corporation nel 1950. Successivamente è stato formalizzato dal matematico Albert W. Tucker, a cui dobbiamo anche il nome del dilemma. Il gioco suppone che due presunti ladri siano stati catturati e messi in carcerazione preventiva. Se entrambi coprono il compagno, negando il fatto, avranno uno sconto di pena di tre anni. Se entrambi accusano il compagno avranno entrambi uno sconto di pena di un anno. Il gioco può essere rappresentato con la tabella riportata sotto. Entrambi i giocatori possono scegliere tra cooperazione con il compagno o defezione. Nelle celle della tabella il primo numero rappresenta il risultato del giocatore di Riga ed il secondo numero (in Corsivo) rappresenta il risultato del giocatore di Colonna. I valori numerici indicano gli sconti di pena che avranno i due giocatori in ognuna delle 4 situazioni possibili (ad esempio, se il giocatore di Riga sceglie Cooperazione ed il giocatore di colonna sceglie Defezione, Il giocatore di Riga non avrà alcuno sconto di pena (0), mentre l'altro, che ha tradito il compagno, avrà 5 anni di sconto.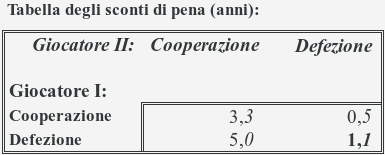 Questo gioco ha un punto di equilibrio stabile nella defezione di entrambi i giocatori, se infatti uno solo di essi proverà a scostarsi dal punto di equilibrio, cooperando, cadrà nella situazione peggiore in cui non si ha nessuno sconto di pena. Nel 1950 Nash, dottorando a Princeton in un breve articolo, aveva dimostrato l'esistenza di punti di equilibrio nei giochi non cooperativi ricorrendo ai risultati di Kakutani, che sono una generalizzazione del metodo di Browuer, per la ricerca del punto fisso alle funzioni con più valori. L'aspetto inquietante del dilemma del prigioniero è dato dal fatto che proprio il punto di equilibrio è l'unico del gioco a non essere Pareto - ottimale cioè è l'unico ad essere dominato (infatti il risultato 3,3, cooperazione, che non è un punto di equilibrio, è migliore per entrambi i giocatori del punto di equilibrio di Nash 1,1 defezione).
Il Gioco iterato è stato simulato al computer da Axelrod nel 1984. Egli ha mostrato che la strategia migliore, che tende a pareggiare con la migliore fra tutte le altre, non è ne quella di Defezione ad oltranza (punteggio1,1) ne quella di Cooperazione ad oltranza (punteggio 3,3) ma è quella denominata "Tit for Tat" ovvero "Occhio per occhio, dente per dente": alla prima mossa collabora alle successive copia la precedente del tuo avversario. Il dilemma del prigioniero fa riflettere profondamente sulle molte situazioni in cui le alternative tra cooperazione e competizione/defezione si presentano in ogni organizzazione.
Vincete più che potete
Questo gioco, in uso in diverse business school, mette insieme la morra cinese, con il dilemma del prigioniero. L'aula viene divisa in tavoli di 4 giocatori ed ogni tavolo gioca 10 partite con le seguenti regole.- Ognuno dei 4 giocatori può scegliere se giocare cooperazione (mano tesa) o defezione (indice puntato). I punti di ogni giocatore sono cosi computati:
- Tutti hanno giocato indice puntato, 6 punti ciascuno.
- Tutti hanno giocato mano tesa, 9 punti ciascuno.
- Giocata mista: 10 punti agli indici puntati e 0 punti alle mani tese.
Riferimenti
- A. Vulpio, "Determinismo e Caos", Carocci Roma 1999;
- Bertuglia, Vaio, "Non linearità, Caos, Complessità", Bollati Boringheri Torino 2003;
- Bischi, Carini,… "Sulle Orme del Caos", Bruno Mondadori Milano 2004;
- R.Chiappi, "Il foglio elettronico come strumento per il Problem Solving", F.Angeli Milano 2008;
- R.Chiappi, "P. Management, P. Solving, D. Making"
- Hume, "Il modello preda-predatore di Volterra"
- V. Franceschini, "Sistemi Dinamici e Caos", Università di Modena 2006
- E. De Sanctis: Come nasce il Caos
- M. Impedovo: Sistemi dinamici Discreti
- F. Ruini: Appunto sulla mappa logistica
- Wikipedia, Equilibrio di Nash


 Accedi a tutti gli appunti
 Tutor AI: studia meglio e in meno tempo




